01¿Son frecuentes los errores de identificación?
Que falten taxónomos no es solo un problema para la ciencia. Como mostraba en la primera parte, de identificar bien una especie dependen decisiones con impacto directo en la agricultura, la salud o la conservación, entre otros ámbitos, y allí conté varios casos en los que una identificación errónea salió cara. La pregunta ahora es otra: ¿son excepciones, o pasa a menudo? Y si pasa a menudo, ¿tiene que ver con que falten especialistas?
Cascadas de errores
Alejandro Bortolus, investigador del CONICET argentino, revisó 80 artículos de ecología de comunidades publicados entre 2005 y 2007 en revistas internacionales de primer nivel. El 62,5 % no daba ninguna información que justificara la identificación de los organismos estudiados, y solo el 2,5 % indicaba haber depositado ejemplares de referencia en una institución científica, así que en el resto ni siquiera es posible comprobar después qué especie se estudió. Como los estudios ecológicos sirven de base a muchas otras disciplinas, un error de identificación no se queda en un artículo, sino que puede propagarse y amplificarse a otros estudios e incluso a programas de gestión ambiental: es lo que Bortolus llamó "cascadas de errores".
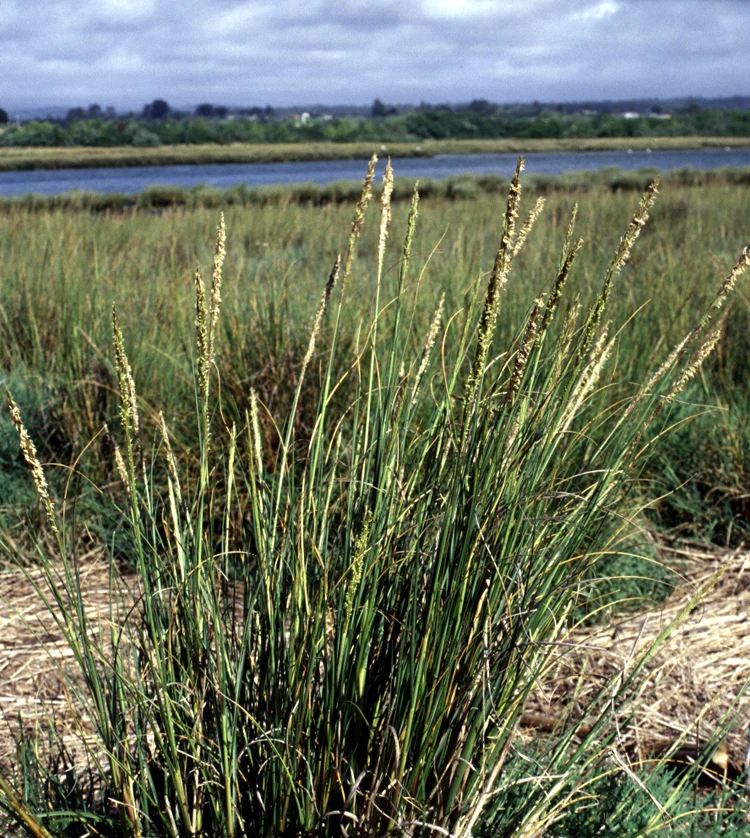
En San Francisco (California), por ejemplo, un proyecto de restauración de finales de los años 70 trasplantó una espartina creyendo que era la especie nativa, Spartina foliosa. En realidad era S. densiflora (Fig. 1), que no se identificó correctamente hasta unos 30 años después, cuando ya se había expandido por la costa oeste de Estados Unidos, desplazando masivamente a los organismos nativos y transformando el paisaje de la región. Para entonces, erradicarla podía ser posible, pero sin garantías de éxito y con un coste elevado (Bortolus 2008).
Un patrón que se repite
Otros estudios, en grupos y regiones muy distintos, encuentran lo mismo (Fig. 2). En 4.500 ejemplares de jengibres africanos conservados en 40 herbarios de 21 países, al menos el 58 % tenía un nombre equivocado antes de una revisión taxonómica reciente. Los autores estiman además que, de media, más de la mitad de los ejemplares de plantas tropicales de las colecciones del mundo probablemente están mal identificados (Goodwin et al. 2015). En ejemplares de herbario de las hiedras (Hedera) de Europa occidental, procedentes de 40 herbarios, el 18 % estaba mal identificado de media, con máximos del 38 % en el Reino Unido y del 27 % en España. Según los autores, estos errores, junto con los ejemplares que ni siquiera llegaron a identificarse a nivel de especie, se debían sobre todo a que quienes los identificaron no conocían bien los caracteres diagnósticos de las hiedras (Coca-de-la-Iglesia et al. 2024).
Bolotov et al. (2024) revisaron una selección de 25 trabajos no taxonómicos con mejillones de agua dulce mal identificados, entre ellos citas en Filipinas y en África occidental de la madreperla de río (Margaritifera margaritifera), una especie amenazada que en realidad solo vive en el este de Norteamérica y en Europa. Y en una red nacional de seguimiento de la biodiversidad de Estados Unidos, los parataxónomos, personal que puede carecer de formación taxonómica formal, identificaron mal el 11,1 % de los escarabajos carábidos. Aunque en conjunto sus estimaciones de riqueza se parecían a las de los expertos, tasas de error de apenas un 5 % bastaban para distorsionar el gradiente de riqueza de especies entre regiones, y se detectaron especies no nativas que no estaban o se pasaron por alto otras que sí (Egli et al. 2020).
Las herramientas modernas tampoco están a salvo de estos errores. En los hongos, alrededor del 20 % de las secuencias depositadas en las bases de datos públicas de ADN podrían estar mal identificadas a nivel de especie (Nilsson et al. 2006), y quien compare sus muestras con ellas puede heredar ese error sin saberlo. En un estudio de casi 4.000 árboles del género Inga en la Amazonía suroccidental, entre el 6,8 y el 7,6 % estaban mal identificados a partir de sus caracteres vegetativos. Esos errores no cambiaban las conclusiones generales sobre las comunidades, pero afectaban mucho a algunos análisis a nivel de especie, y los autores encontraron que un enfoque solo molecular también habría cometido errores importantes: la mayor precisión se obtiene combinando morfología y ADN (Dexter et al. 2010).
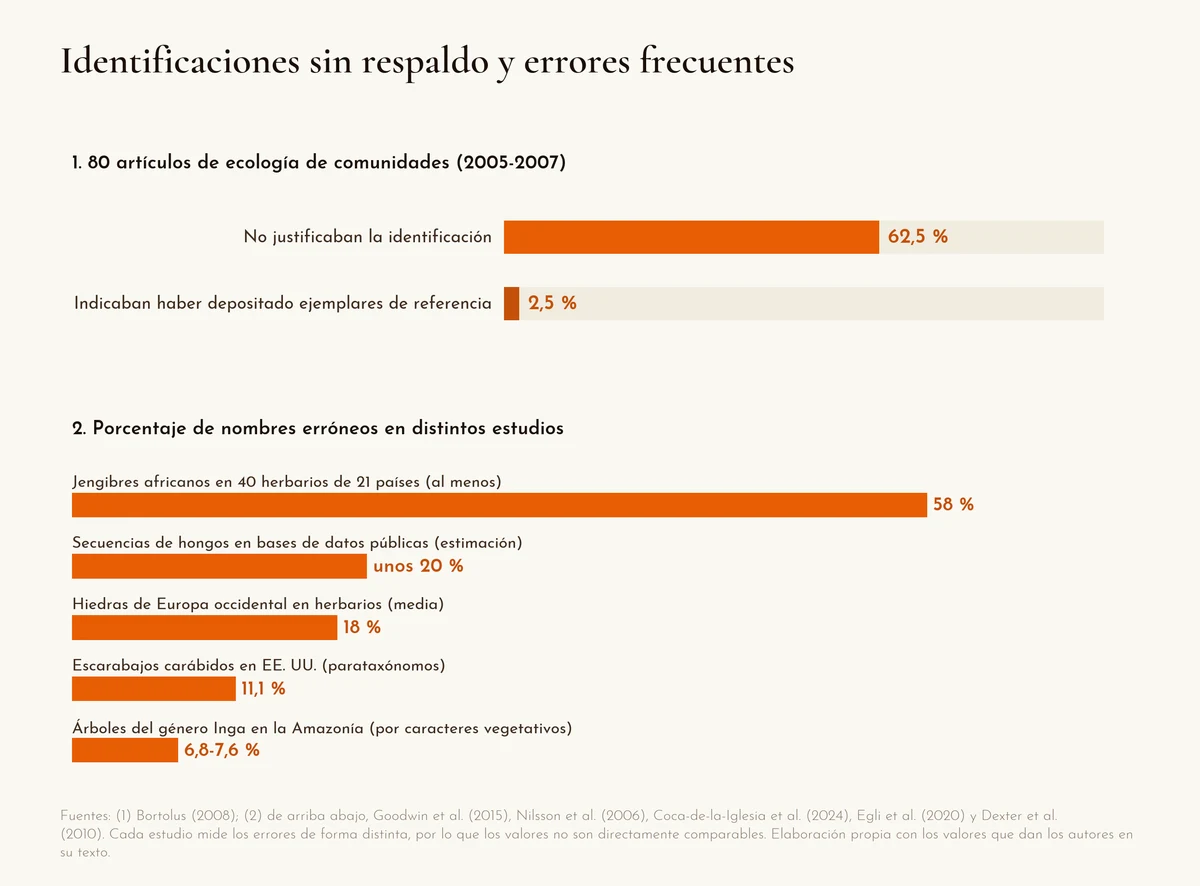
Según los estudios revisados, entre alrededor de un 7 % y más de la mitad de los ejemplares o registros llevan el nombre equivocado, según el grupo y el método. Algunos relacionan esos errores con la falta de formación taxonómica de quien identifica, y documentan cómo pueden propagarse a otros trabajos y a decisiones de gestión. La pregunta, entonces, es si hay formas de identificar especies, y de describir las que faltan, que no dependan tanto de los taxónomos.
02¿Hay atajos?
¿Identificar sin especialistas?
Una de las primeras propuestas fue el DNA barcoding. Hebert et al. (2003) lo plantearon porque, según ellos, buena parte de la investigación biológica depende de identificar bien las especies, y cada vez quedan menos especialistas capaces de hacerlo. El DNA barcoding, como vimos en la primera parte, identifica ejemplares comparando un fragmento de ADN con una biblioteca de secuencias de referencia. Para ellos, era la única forma de mantener a largo plazo la capacidad de identificar especies, y sus primeros resultados eran prometedores: con una biblioteca formada por un ejemplar de cada una de 200 especies de lepidópteros muy próximas entre sí, identificaron correctamente todos los ejemplares que analizaron después (Hebert et al. 2003).
La misma lógica se ha aplicado después a otras técnicas. El metabarcoding de ADN ambiental recoge el ADN que los animales dejan en el agua, por ejemplo con la piel, el moco o las heces, lo secuencia y asigna cada secuencia a una especie comparándola con las bases de datos públicas, sin necesidad de capturar a los animales (Marques et al. 2021). Desde hace décadas se buscan también sistemas que identifiquen especies automáticamente a partir de imágenes, precisamente por la escasez de especialistas (Valan et al. 2019), y otros que las reconozcan por sus sonidos (Stowell 2022). Y la espectrometría de masas MALDI-TOF, que compara el perfil de proteínas de un ejemplar con una base de datos de referencia, se ha propuesto para identificar mosquitos, según sus autores incluso sin conocimientos especializados (Yssouf et al. 2013).
Todas estas técnicas funcionan de la misma manera en lo esencial: comparan cada muestra con una referencia ya identificada, sea una biblioteca de secuencias o un conjunto de imágenes, espectros o grabaciones. Y su fiabilidad depende de esa referencia: de que esté bien identificada y completa. Es decir, para que estas técnicas sean fiables, hacen falta taxónomos especialistas que construyan, o al menos verifiquen, esas referencias.
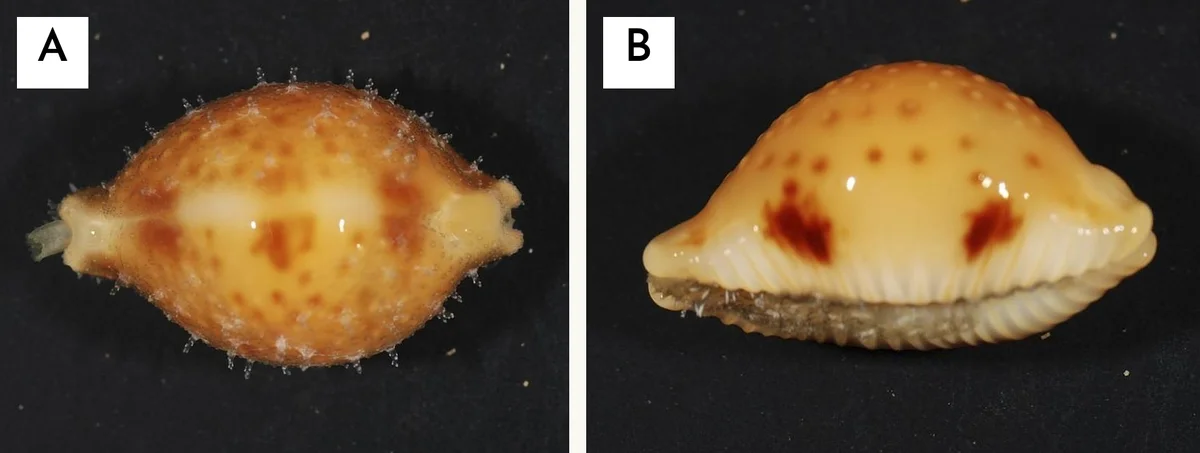
En el DNA barcoding, por ejemplo, las propias bibliotecas de secuencias contienen errores, como vimos en el capítulo anterior (Nilsson et al. 2006). La biblioteca, además, tiene que estar completa, y eso exige haber recolectado e identificado bien suficientes ejemplares de cada especie como para tener una buena representación de cuál es su variabilidad intra e interespecífica. En un grupo de caracoles marinos muy bien estudiado, las porcelanas o cauris (familia Cypraeidae), Meyer y Paulay (2005) compararon ejemplares con una biblioteca muy completa, basada en una revisión taxonómica detallada que combinaba morfología y ADN. Aun así, en el mejor de los casos, entre el 4 y el 12 % de las identificaciones eran erróneas, en parte porque algunas especies de origen reciente no se distinguen por ese fragmento de ADN (Fig. 3). En los grupos mal muestreados, el método funciona todavía peor (Meyer & Paulay 2005; Wiemers & Fiedler 2007). Según Meyer y Paulay (2005), el DNA barcoding solo cumplirá lo que promete si se apoya en una base taxonómica sólida. Otros trabajos también recomiendan cautela a la hora de usarlo como única herramienta para identificar o delimitar especies (Hickerson et al. 2006; Meier et al. 2006; Rubinoff et al. 2006; Wiemers & Fiedler 2007), y Collins y Cruickshank (2013) señalan errores frecuentes en el diseño de estos estudios.
En el ADN ambiental, otra de las técnicas de las que hablamos antes, la principal limitación es que las bases de datos están incompletas. En los peces, por ejemplo, esas lagunas crecen hacia los trópicos, que es donde se concentran tanto la mayor riqueza de especies como el mayor número de especies amenazadas. En los de agua dulce, con uno de los marcadores analizados, las secuencias disponibles cubrían el 83 % de las especies en las cuencas situadas entre los 48° y 52° de latitud norte, pero solo el 23 % en las cercanas al ecuador (Marques et al. 2021).
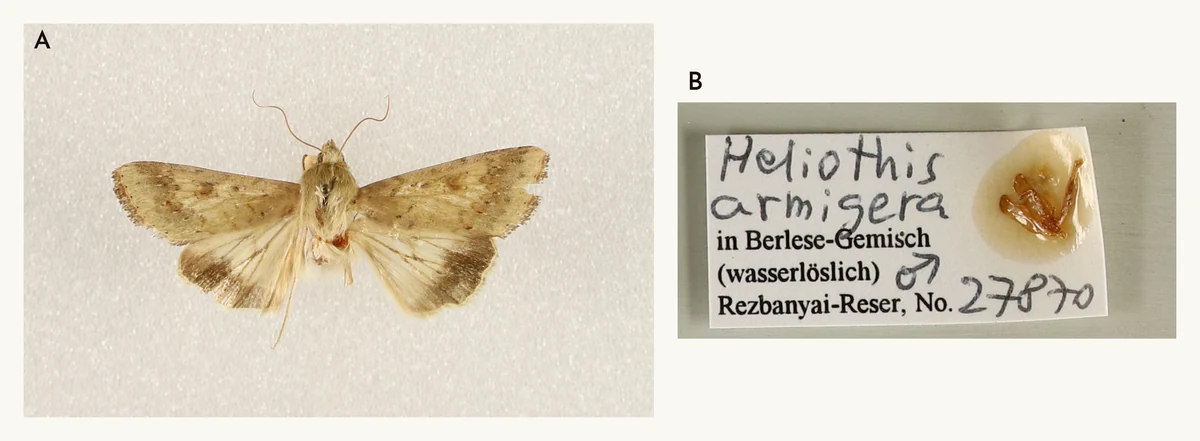
Con las imágenes pasa algo parecido. Estos programas suelen necesitar cientos de imágenes de cada especie para aprender a detectarla, y reunirlas y etiquetarlas es lento, difícil y caro (Høye et al. 2021), aunque algunos métodos obtienen buenos resultados con 100 imágenes o menos por categoría (Valan et al. 2019). Esas imágenes, además, tienen que estar bien identificadas, y Høye et al. (2021) recomiendan verificar las identificaciones con varios taxónomos especialistas o con ADN, cuya fiabilidad, como hemos visto, también depende de los taxónomos. Además, en grupos con especies muy parecidas, puede que sencillamente no sea posible identificar un ejemplar con seguridad sin preparar su genitalia interna (Valan et al. 2019; Fig. 4), lo que en la práctica implica capturarlo y sacrificarlo. Y, para que sirva de referencia, habría que fotografiar sus caracteres diagnósticos antes y después de la disección, algo que normalmente requiere equipos especializados y conocimientos avanzados.
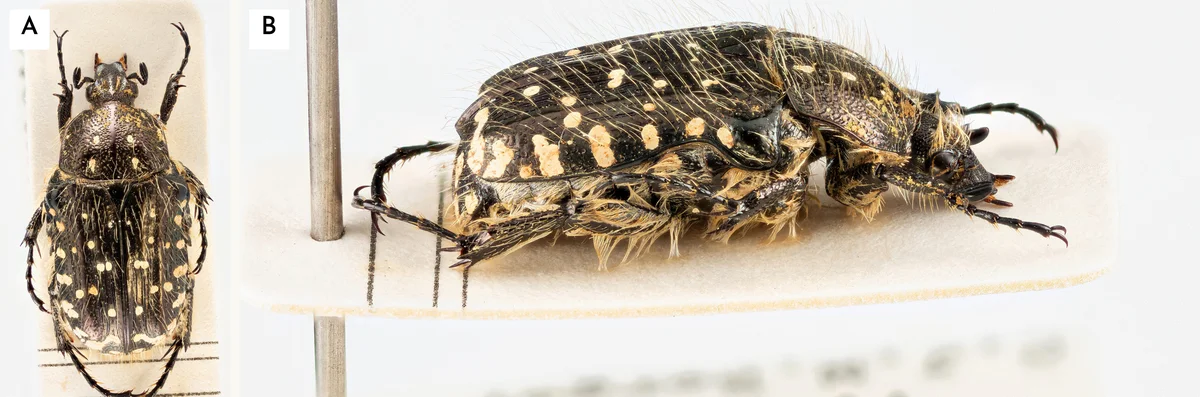
Valan et al. (2019) pusieron a prueba su sistema con tres especies de escarabajos del género Oxythyrea muy difíciles de separar, y acertó en el 97 % de los casos, más que un destacado especialista. Pero los propios autores reconocían que, en los ejemplares del norte de África, esas especies no pueden identificarse con total seguridad solo por la vista dorsal: hace falta examinar también la parte ventral, y ayudan la forma de la genitalia y la localidad de recolección (Sabatinelli 1981, Mikšić 1982 y Baraud 1992, citados en Valan et al. 2019; Fig. 5). Con esa información, según ellos, los mejores especialistas sí podrían superar al programa. Y estos sistemas tienen dificultades con las especies raras, porque puede que no haya suficientes ejemplares de las más raras para entrenarlos, y detectar las especies que no aparecen en sus datos de entrenamiento exige técnicas específicas (Høye et al. 2021).
Con la espectrometría de masas ocurre lo mismo. En el estudio de MALDI-TOF, el sistema identificó correctamente todos los mosquitos con los que lo pusieron a prueba, pero hay que tener en cuenta que solo tenía que elegir entre las 20 especies de su base de datos. Esa base de datos, además, se creó a partir de ejemplares identificados por su morfología con claves de identificación, algo que, según los propios autores, requiere experiencia y formación en entomología (Yssouf et al. 2013).
Los programas que reconocen animales por sus sonidos necesitan muchas grabaciones etiquetadas, que a veces solo puede etiquetar un especialista, y los especialistas suelen tener poco tiempo disponible para hacerlo. Además, la investigación con estas técnicas se ha centrado sobre todo en aves y mamíferos marinos, así que no refleja la diversidad de animales que emiten sonidos (Stowell 2022).
Su fiabilidad, además, varía mucho según el grupo. En los murciélagos, varias especies no pueden identificarse con seguridad por sus llamadas de ecolocalización, y ningún programa se ha acercado al 100 % de aciertos (Russo & Voigt 2016). En un estudio en Suecia, tres programas reconocieron bien las especies de llamadas más características, pero no otras: en dos especies del género Myotis, los aciertos variaron entre el 0 y el 98 % según el programa y la especie. Los autores pidieron también a tres colegas que identificaran a mano una parte de esas grabaciones. Acertaron más que los programas en casi todos los casos, pero dos de ellos también confundieron especies de Myotis, y los autores advierten de que, incluso a mano, identificar las especies de este género conlleva un riesgo claro de errores considerables (Rydell et al. 2017).
En las aves de la Amazonía brasileña, dos programas de identificación automática de uso global, BirdNET y Perch, detectaron de media solo entre el 8 y el 11 % de los cantos y llamadas, y funcionaron peor con las familias más diversas (Metcalf et al. 2026). Con cuatro especies de anuros del noreste de Estados Unidos, la identificación de las grabaciones de oído cometió menos de un 2 % de errores, frente al 18-31 % de los métodos automáticos (Brauer et al. 2016). Y en los ortópteros, a pesar de que un programa de identificación automática entrenado para 17 especies del norte de Alemania detectó correctamente la presencia de la especie en el 86,4 % de los casos en datos de prueba independientes, sus autores recomiendan que un especialista verifique los resultados (Bennett et al. 2025).
Así que, a la hora de identificar, estas técnicas pueden ayudar mucho, pero siguen necesitando especialistas que construyan sus referencias y revisen sus resultados.
¿Describir más deprisa?
Identificar las especies ya conocidas es solo una parte del trabajo. La otra es describir las que faltan, y al ritmo actual, en los dípteros harían falta siglos incluso para los grupos bien estudiados (Cerretti et al. 2025). Para acelerar el descubrimiento y la descripción de especies, varios autores han defendido una taxonomía basada en el ADN (Tautz et al. 2003 y Blaxter 2004, citados en Ziegler et al. 2025). Blaxter (2004), por ejemplo, propuso definir, a partir de secuencias de ADN, unidades taxonómicas moleculares de extensión parecida a la de las especies tradicionales. A ello se han sumado herramientas genómicas que analizan miles de marcadores, métodos estadísticos que estiman cuántas especies hay en una muestra a partir de datos moleculares y estudios que sugieren que la morfología subestima a menudo el número de especies (Ziegler et al. 2025).
Esta última idea también se discute. Tiene que ver con las llamadas especies crípticas: especies distintas que no pueden distinguirse por su aspecto y que solo se detectan con ADN. En grupos difíciles de estudiar, el ADN ha permitido detectar muchas posibles especies nuevas de este tipo, pero, una vez separadas, a menudo se encuentran también diferencias morfológicas que las distinguen. Y en faunas de insectos bien estudiadas, solo entre el 1 y el 2 % de las especies podrían ser realmente crípticas (Stork 2018). Para Korshunova et al. (2019), de hecho, no hay una frontera clara entre especies "crípticas" y "no crípticas": que una especie lo parezca depende del nivel de detalle con que se estudie.
Delimitar especies solo con un umbral de distancia genética, es decir, considerar especies distintas a los ejemplares cuyo ADN difiere más de un porcentaje fijo, también puede fallar mucho. En las cauris, los caracoles marinos del estudio de Meyer y Paulay (2005) que vimos antes, la variación genética intraespecífica (dentro de cada especie) y la diferencia interespecífica (entre especies próximas) se solapaban, e incluso con el umbral más favorable el error era de alrededor del 17 %, y casi el doble si se tomaban como referencia las especies reconocidas tradicionalmente por su morfología. Según estos autores, es probable que ese solapamiento sea importante en la mayoría de los grandes grupos de animales, sobre todo en los muy diversos y poco estudiados.
Will y Rubinoff (2004) sostienen que el DNA barcoding no puede sustituir a la morfología. La alternativa que proponen otros autores es combinar varias fuentes de evidencia, lo que Dayrat (2005) llamó "taxonomía integrativa", la que busca delimitar las unidades de la diversidad de la vida desde perspectivas múltiples y complementarias, como la morfología comparada, la genética de poblaciones, la filogeografía, la ecología, el desarrollo o el comportamiento. Padial et al. (2010) la defendieron como el futuro de la disciplina.
En la práctica, ¿ha cambiado la forma de describir especies? Ziegler et al. (2025) lo comprobaron con especies nuevas de nueve grandes grupos de seres vivos. En los mayores, como los artrópodos, los moluscos y las plantas, que reúnen en torno al 90 % de las especies conocidas, la mayoría de las especies nuevas se seguían describiendo solo con datos morfológicos. En otros grupos, como los cordados o los hongos, la mayoría combinaban datos moleculares y morfológicos, y solo 2 de las 500 especies nuevas analizadas se basaban únicamente en datos moleculares. Según los autores, muchas de las nuevas herramientas para delimitar especies apenas se usan, probablemente porque no son la forma más rápida de describirlas antes de que se extingan.
Otro análisis revisó más de 4 millones de documentos indexados en Web of Science entre 1988 y 2023 sobre animales, plantas terrestres, hongos, varios linajes de protistas y cianobacterias. La proporción de estudios que usan métodos moleculares creció con rapidez cuando empezaron a adoptarse, pero después se estabilizó, normalmente entre aproximadamente el 25 y el 45 % (las diatomeas son una excepción) (Kollár et al. 2025, citado en Kollár 2026). Para Kollár (2026), esta estabilización indica que las técnicas moleculares se integran con las tradicionales en lugar de sustituirlas.
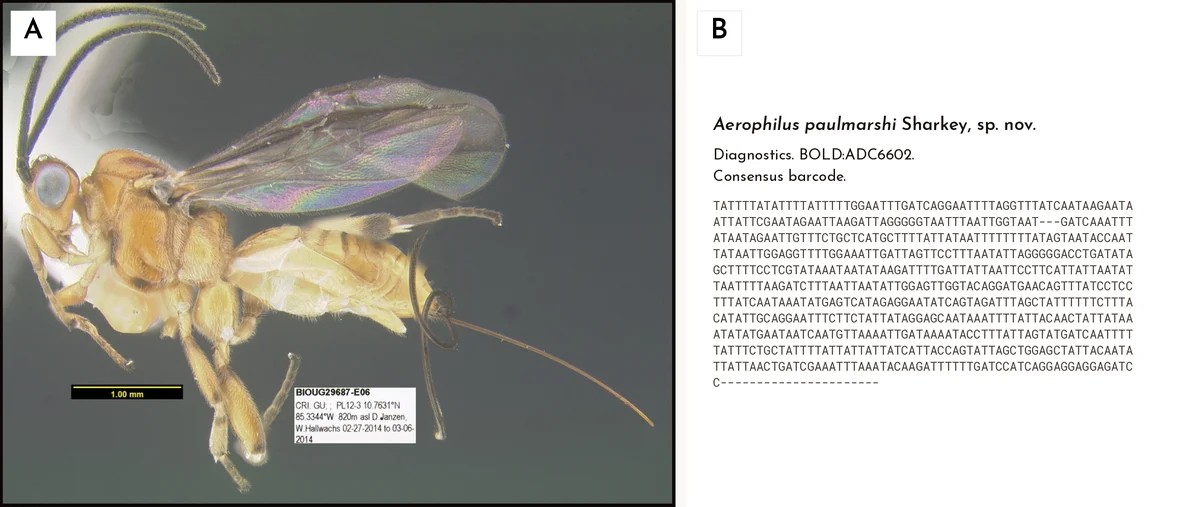
Otros autores han propuesto acelerar la propia descripción. Con el objetivo declarado de superar el impedimento taxonómico, Sharkey et al. (2021) describieron o redescribieron 416 especies de avispas bracónidas de Costa Rica (todas salvo 13 nuevas para la ciencia) en un solo trabajo. Distinguieron las especies sobre todo por su código de barras de ADN, aunque en algunos complejos de especies usaron también la morfología y, en el 55 % de los casos, los datos de cría. La mayoría de las descripciones consisten en una imagen lateral o dorsal del holotipo, una secuencia consenso de su código de barras de ADN, su código BIN con enlace a la base de datos BOLD y los datos del holotipo que exige el Código (Fig. 6).
Engel et al. (2021) criticaron este tipo de propuestas: rechazan que un código de barras de ADN sustituya a la descripción de la especie y sostienen que el problema de fondo no es la falta de técnicas, sino de taxónomos. Meier et al. (2021), por su parte, volvieron a analizar los datos de Sharkey et al. con distintos métodos de delimitación de especies y concluyeron que muchas de sus especies no son estables, que un código de barras consenso no sirve como diagnosis y que el COI por sí solo no basta para delimitar y describir especies. Fernandez-Triana (2022) añade que estos trabajos no son tan rápidos como parecen. En el caso de Guanacaste, en Costa Rica, se apoyaron en años de trabajo previo, con parataxónomos y técnicos que recolectaron, criaron, registraron y secuenciaron miles de ejemplares antes de que empezara el trabajo de los taxónomos. Además, si una especie se describe solo con ADN, quien quiera identificar después un ejemplar tendrá que secuenciarlo primero.
No todos los atajos son así. Butcher et al. (2012) describieron 179 especies nuevas de avispas del género Aleiodes de Tailandia combinando el código de barras de ADN con la morfología, con fotografías, descripciones breves y una clave de identificación ilustrada, aunque les llevó más tiempo del que esperaban. Según Agnarsson (2026), los atajos que funcionan ahorran tiempo repartiendo mejor el esfuerzo, no reduciendo las pruebas. Y una mala descripción tampoco ahorra tiempo: en las arañas, solo entre 2013 y 2024 se invalidaron 335 especies descritas por Embrik Strand y 162 por Cândido de Mello-Leitão, y cada una de esas sinonimias exigió un trabajo de revisión que no habría hecho falta con descripciones adecuadas (Agnarsson 2026).
Por ahora, por tanto, el ADN solo acelera la descripción de especies cuando se apoya en mucho trabajo previo, como bibliotecas de referencia amplias y bien revisadas por taxónomos, y no sustituye a la morfología.
¿Y sin recolectar?
Otra forma de acelerar la descripción sería prescindir de los ejemplares, lo que además evitaría sacrificarlos. En 2014, Minteer et al. sostuvieron que ya no hace falta recolectar ejemplares para describir una especie (citado en Marshall & Evenhuis 2015). Al año siguiente, Marshall y Evenhuis (2015) describieron una mosca nueva de Sudáfrica solo con fotografías, porque el ejemplar que capturaron se les escapó antes de poder conservarlo. Aun así, defienden que los ejemplares siguen siendo la mejor referencia, y que solo debería describirse una especie sin ellos cuando no sea posible conservar ninguno. Según su interpretación del Código, una descripción así es válida, porque el Código permite designar como holotipo un ejemplar a partir de su ilustración, aunque ese ejemplar ya no exista (ICZN 1999, art. 73.1.4).
En 2016, 35 investigadores defendieron en Nature este tipo de descripciones (Pape et al. 2016). Les respondieron 493 taxónomos e investigadores de colecciones, en un texto que Nature rechazó publicar y que apareció en Zootaxa. Según ellos, las descripciones modernas necesitan al menos un ejemplar tipo depositado en un museo, porque tiene muchos caracteres que no se ven en una fotografía y es lo que permite comprobar y refutar lo que se afirma. También advierten de que este tipo de taxonomía facilitaría la difusión de descripciones basadas en pruebas imposibles de verificar (Ceríaco et al. 2016). Hoy, con herramientas de inteligencia artificial capaces de generar imágenes realistas, ese riesgo es todavía mayor.
Byrne (2023), por su parte, propuso una "recolección compasiva", que reduzca el daño a los animales tomando muestras no letales, como ADN, fotografías o grabaciones, y que use las nuevas tecnologías para que no haga falta recolectar animales completos. Un grupo de 119 investigadores le respondió que las fotografías, las grabaciones y las secuencias de ADN, ni por separado ni juntas, aportan información de la misma calidad que un ejemplar completo (Nachman et al. 2023).
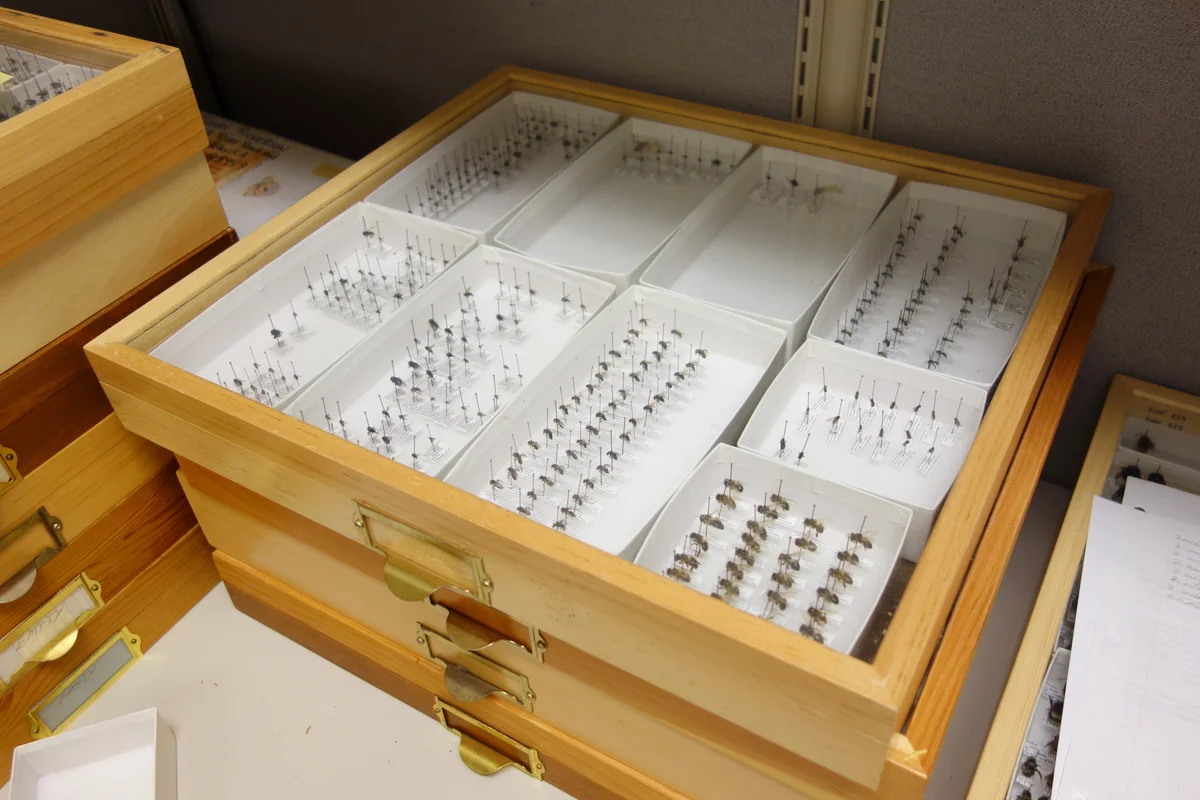
Hay varios motivos. Como vimos en la primera parte, desde 2000 toda especie animal nueva debe tener un holotipo (o sintipos), el ejemplar de referencia al que queda ligado su nombre, y hay que indicar en qué colección se deposita (ICZN 1999, art. 16.4). Ese ejemplar es la referencia física con la que se pueden comparar otros individuos. Además, la mayoría de las especies animales son pequeños artrópodos, como insectos y ácaros, que en su mayor parte no pueden encontrarse por medios no letales ni identificarse sin examinarlos al microscopio. Las muestras no letales tampoco permiten aprovechar al máximo la posibilidad de relacionar la información genética con los rasgos del organismo, mientras que un ejemplar completo puede volver a estudiarse en el futuro con técnicas que hoy ni siquiera imaginamos (Nachman et al. 2023; Fig. 7). Y el futuro, en taxonomía, llega tarde: en una muestra de especies descritas en 2007 pasaron de media unos 21 años entre la primera recolección y la descripción, y a veces más de un siglo (Fontaine et al. 2012a; Conle et al. 2020).
La otra gran objeción es que la recolecta científica daña a las poblaciones. Los estudios que lo han medido no han encontrado ese efecto. En las aves, los cálculos de Remsen (1995) muestran que el efecto de la recolecta científica sobre la mayoría de las poblaciones es insignificante. El autor señala además que es la única causa de mortalidad tan controlada, mientras que otras actividades humanas matan a muchísimas más aves. En las abejas silvestres, un experimento que retiró de media 2.862 ejemplares por temporada, con muestreos cada dos semanas entre 2009 y 2012, no encontró ningún efecto sobre la abundancia, la riqueza de especies, la equitatividad ni la composición de grupos funcionales de las comunidades muestreadas (Gezon et al. 2015). Y en los pequeños mamíferos, los datos de seguimiento a largo plazo sugieren que el trampeo con retirada de ejemplares tiene un impacto mínimo sobre la riqueza de especies, la diversidad y la abundancia (Hope et al. 2018). Aun así, estos últimos autores reconocen que pocos estudios han medido directamente estos efectos y piden estudiar los de la recolecta de baja intensidad en otros grupos y biomas.
Otros autores comparan la recolecta científica con otras causas de muerte. Toda la colección de vertebrados del Museo Victoria, en Australia, reúne menos de 200.000 ejemplares recolectados en ese estado en más de 150 años, menos de uno por kilómetro cuadrado, y, según Clemann et al. (2014), el impacto de la recolecta científica sobre las poblaciones silvestres suele ser ínfimo comparado con el de la depredación, las enfermedades, los atropellos o la pérdida de hábitat. En los murciélagos neotropicales, Moratelli (2014) calcula que recolectar 20 o 30 ejemplares al año en una misma localidad no afecta a las poblaciones de las especies más comunes, y recuerda que un par de búhos, gavilanes o halcones retiran muchos más individuos que los biólogos. Y en las aves, según Collar (2000), ni siquiera en la gran época de expansión de los museos, cuando parte de la recolecta pudo ser excesiva, hay un solo caso documentado de extinción causada directamente por ella.
Eso no significa que el riesgo sea nulo. Según Kozel et al. (2017), las trampas de caída, muy usadas para estudiar la fauna de las cuevas, pueden reducir las poblaciones de algunas especies si se mantienen mucho tiempo o se repiten en los mismos puntos, algo especialmente grave en especies protegidas o con poblaciones pequeñas. Waeber et al. (2017) señalan, por ejemplo, que algunos escorpiones endémicos de Madagascar, de ciclo vital muy largo, podrían verse amenazados por la destrucción de su hábitat y por recolectas intensivas, científicas y de otro tipo. Y en Malawi, donde queda poco bosque fuera de las reservas, Dowsett-Lemaire et al. (2015) consideran probable que la recolecta repetida de aves en reservas pequeñas, con cientos de ejemplares por campaña, amenace a algunas poblaciones aisladas. Por eso, varios de estos autores defienden una recolecta prudente, que evalúe antes el estado de las poblaciones (Collar 2000; Clemann et al. 2014; Dowsett-Lemaire et al. 2015). En cualquier caso, según Waeber et al. (2017), recolectar ejemplares está justificado en la mayoría de los casos y sigue siendo necesario.
Así que, según los estudios revisados, las nuevas técnicas pueden ayudar a identificar y a describir especies, e incluso, como veremos, a atraer financiación para la taxonomía, pero no son un atajo que permita prescindir de los taxónomos: todas dependen de referencias bien identificadas, y estas, de ejemplares estudiados por taxónomos y conservados en colecciones. Y si faltan taxónomos, también faltan referencias fiables. En los peces, por ejemplo, y como vimos, las lagunas de las bases de datos son mayores precisamente en los trópicos, donde hay más especies (Marques et al. 2021).
03Lo que sí ha funcionado
Los casos documentados que he encontrado apuntan a tres cosas: financiación estable, equipos que combinan especialistas, parataxónomos y técnicas nuevas, y el trabajo de aficionados y jubilados.
Dinero para formar y contratar
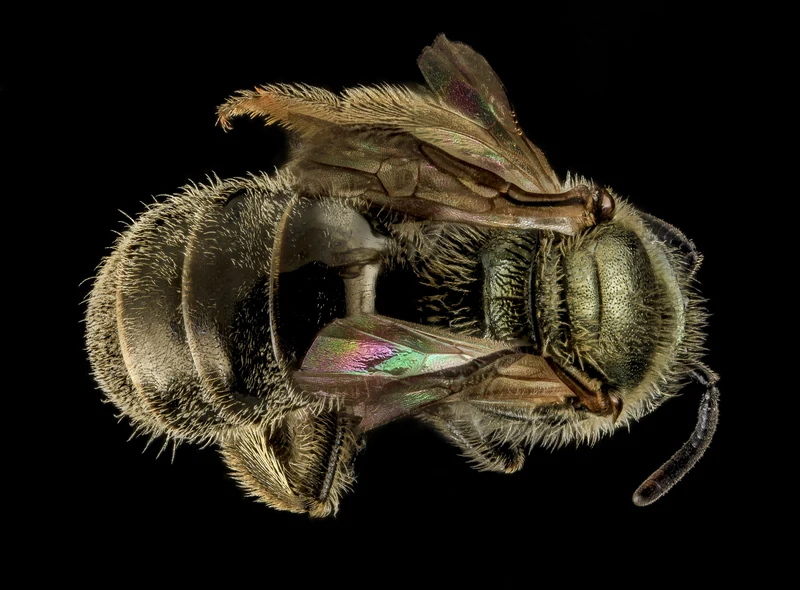
Como vimos en la segunda parte, entre 1991 y 2007 los fondos que el principal organismo público canadiense de financiación de las ciencias naturales dedicaba a la investigación taxonómica a través de uno de sus comités cayeron un 55 % descontando la inflación (Packer et al. 2009). Pero el mismo estudio muestra también la otra cara: cuando llegó la financiación asociada al DNA barcoding, los recursos para la taxonomía volvieron a niveles cercanos a los de 1980 y aumentó mucho el número de personas formándose en taxonomía. Y no solo en técnicas moleculares: en el laboratorio de uno de los autores, esos fondos permitieron completar dos grandes revisiones de las especies canadienses de dos grupos de abejas (Fig. 8) (una de ellas con más de 200 ilustraciones) y cuatro revisiones menores (Packer et al. 2009).
En Estados Unidos, la National Science Foundation puso en marcha en 1995 el programa PEET (Partnerships for Enhancing Expertise in Taxonomy), con tres objetivos: formar nuevos taxónomos, hacer revisiones monográficas y crear infraestructura informática. Cada proyecto recibía 750.000 dólares para cinco años, y hasta 2007 se habían financiado más de 60 (Rodman 2007). De los 42 becarios previstos en los proyectos de la primera convocatoria, 33 (el 79 %) declararon haber conseguido un puesto a tiempo completo relacionado con sus intereses taxonómicos (Rodman & Cody 2003, citado en Rodman 2007). Un sondeo posterior de los becarios de las convocatorias de 1995 y 1997 encontró una proporción menor, del 53 % (Agnarsson & Kuntner 2007, citado en Rodman 2007).
En Brasil, la Fundación de Apoyo a la Investigación del Estado de São Paulo (FAPESP) lanzó a finales de los años 90 el programa BIOTA/FAPESP para impulsar la investigación sobre biodiversidad. Solo en invertebrados terrestres, financió 26 proyectos que generaron unas 1.140 publicaciones, con la descripción de 1.187 especies y 76 géneros nuevos. Cerca de 300 de las personas que participaron en esos proyectos eran estudiantes, 95 de ellas de maestría y 75 de doctorado (Noll et al. 2022).
Especialistas, parataxónomos y técnicas, juntos
En el Área de Conservación Guanacaste, en el noroeste de Costa Rica, un equipo de costarricenses que viven en la zona, con estudios de primaria o secundaria, cría desde 1978 orugas, sus plantas nutricias y sus parasitoides. Son los parataxónomos, conocidos localmente como "gusaneros", que en 2011 eran 33. No son voluntarios: son empleados a largo plazo, pagados por el Área de Conservación o por proyectos con financiación externa. Su trabajo diario se coordina con una amplia red de taxónomos especialistas de distintas instituciones, y desde 2003 se combina con el DNA barcoding. A principios de 2011, entre las orugas criadas y las polillas adultas recolectadas, se habían secuenciado unas 9.000 especies distinguibles por su código de barras, lo que elevó la estimación del total de especies de lepidópteros del área de 12.500 a 15.000. Aun así, los propios autores señalan dos limitaciones: hacen falta más recursos para conservar y curar los ejemplares de referencia, y, cuando el ADN separa en varias especies crípticas lo que se consideraba una sola, a menudo no está claro a cuál de ellas corresponde el ejemplar tipo del nombre ya existente (Janzen & Hallwachs 2011).
Al criar las orugas, obtienen también los parasitoides que salen de ellas, entre ellos avispas bracónidas. De ese material procede alrededor de la mitad de las especies nuevas de bracónidos de Sharkey et al. (2021) que vimos en el capítulo anterior, y varias llevan el nombre de parataxónomos, como Chelonus hazelcambroneroae, dedicada a Hazel Cambronero (Sharkey et al. 2021).
Aficionados y jubilados
Una parte importante de las especies nuevas no la describen profesionales. En Europa, entre 1998 y 2007, los taxónomos que cobraban por hacer taxonomía describieron solo el 37,8 % de las especies nuevas; el resto lo describieron aficionados y profesionales jubilados. Y no solo en grupos llamativos: los no profesionales describieron el 52,7 % de los dípteros nuevos y el 26,7 % de los ácaros (Fontaine et al. 2012b).
En los moluscos marinos de todo el mundo, el 40 % de los primeros autores de las descripciones son aficionados, y firman el 57 % de las especies nuevas. Bouchet et al. (2016) comprobaron además que no se centran solo en las especies grandes y vistosas, y concluyen que, con el escaso apoyo de las instituciones académicas y de las entidades que financian la investigación, el inventario de los moluscos marinos del mundo depende de la participación masiva de estos aficionados. Es decir, los aficionados suplen en parte una carencia, pero no la resuelven.
Esa aportación, además, tampoco está garantizada. En el Reino Unido, el número de aficionados que publicaban trabajos taxonómicos en una revista entomológica de referencia descendió desde los años 50, y el de profesionales desde los 60. Desde los 80 hubo un ligero repunte de los aficionados, sin volver a los niveles anteriores, que los autores atribuyen probablemente a unos pocos profesionales recién jubilados y no a una nueva generación de aficionados (Hopkins & Freckleton 2002).
04¿Qué haría falta?

Ninguno de estos casos prescinde de los taxónomos. Y las soluciones que propone la literatura revisada se repiten bastante, y responden en buena parte a las causas que vimos en la segunda parte. Löbl et al. (2023), por ejemplo, piden, entre otras medidas, aumentar de forma significativa la financiación de plazas permanentes para taxónomos, sobre todo en los museos de historia natural. También piden recuperar la investigación y la enseñanza de la taxonomía en las universidades, con plazas de profesor permanente; dejar de evaluar a los investigadores con métricas basadas en revistas y centrarse en la calidad; y poner fin a la tendencia hacia una legislación prohibitiva sobre la recolecta científica y el intercambio internacional de ejemplares, creando en su lugar marcos legales que apoyen la investigación sobre la biodiversidad. La formación de nuevos taxónomos y su contratación en plazas permanentes es, además, uno de los tres grandes retos que señalan Britz et al. (2020; Fig. 9).
La colaboración internacional es clave: los artículos que describen especies nuevas firmados por autores de países tropicales con mucha biodiversidad y poca infraestructura taxonómica tienen tasas muy altas de colaboración internacional (Grieneisen et al. 2014). Y, como vimos en la segunda parte, los trámites de los permisos dificultan precisamente esa colaboración. Neumann et al. (2018) y Acosta y Pérez-González (2019) no cuestionan que haya que regular el acceso a la biodiversidad. Lo que proponen es distinguir entre el uso comercial y la investigación sin fines de lucro, y simplificar el acceso al material biológico para esta última, algo que el propio Protocolo de Nagoya contempla, aunque de forma algo difusa, en su artículo 8, que pide medidas simplificadas de acceso para la investigación sin fines comerciales (Acosta & Pérez-González 2019).
Como recuerdan Domínguez y Dos Santos (2014), citando a Smith et al. (2011), la taxonomía es el servicio oculto detrás de actividades que van desde la conservación de la biodiversidad hasta la seguridad alimentaria, el bienestar humano, el desarrollo de nuevos productos industriales o el ecoturismo. Según estos mismos autores, como su beneficio económico puede no ser evidente a corto o medio plazo, la taxonomía sufre desde hace mucho tiempo falta de financiación. Además, formar a un taxónomo lleva años, y cuando la financiación se interrumpe, aunque sea por poco tiempo, los especialistas cambian de actividad y rara vez vuelven a la taxonomía.
La serie empezó con Linneo. Casi tres siglos después, generaciones de naturalistas y taxónomos han puesto nombre a unos 2,3 millones de especies (Catalogue of Life 2025), y los años con más especies nuevas descritas, más de 16.000 cada uno, son todos posteriores a 2015 (Li et al. 2025). Pero aún quedan millones por nombrar (Costello et al. 2013a), muchas en los trópicos, donde faltan taxónomos y referencias, y algunas podrían desaparecer antes de que nadie las describa. Que lleguen a tener nombre no depende de ninguna máquina, sino de que haya personas formadas y con medios para hacerlo. Y, si tantas actividades dependen de la taxonomía, parece razonable que quienes se benefician de ella, sean administraciones, empresas, reservas naturales o particulares, contribuyan también a sostenerla. Así que, a la pregunta que da título a este artículo, lo que se desprende de los estudios revisados es que hay soluciones, pero no atajos: financiación estable para formar y contratar taxónomos, una forma de evaluar su trabajo que no los penalice, permisos que no frenen la investigación sin fines comerciales y colecciones bien mantenidas. Ninguna es nueva. Lo que falta es decidir ponerlas en marcha.
Referencias
Mostrar las 84 referencias
- Acosta, L.E. & Pérez-González, A. (2019). ¿Quién va a describir nuestra biodiversidad?: el impedimento taxonómico frente al Protocolo de Nagoya y las normativas vigentes. Revista del Museo Argentino de Ciencias Naturales, 21(1), 17–27. https://doi.org/10.22179/REVMACN.21.629
- Agnarsson, I. (2026). Taxonomy takes time: shortcuts to synonymy. Taxonomy, 6(3), 56. https://doi.org/10.3390/taxonomy6030056
- Agnarsson, I. & Kuntner, M. (2007). Taxonomy in a changing world: seeking solutions for a science in crisis. Systematic Biology, 56(3), 531–539. https://doi.org/10.1080/10635150701424546
- Baraud, J. (1992). Coléoptères Scarabaeoidea d’Europe. Faune de France, 78. Fédération Française des Sociétés de Sciences Naturelles & Société Linnéenne de Lyon. 856 pp.
- Bennett, D., Nissen, H., Maschke, M.A., Reck, H. & Diekötter, T. (2025). Recent technological developments allow for passive acoustic monitoring of Orthoptera (grasshoppers and crickets) in research and conservation across a broad range of temporal and spatial scales. Basic and Applied Ecology, 84, 147–157. https://doi.org/10.1016/j.baae.2025.03.004
- Blaxter, M.L. (2004). The promise of a DNA taxonomy. Philosophical Transactions of the Royal Society B, 359(1444), 669–679. https://doi.org/10.1098/rstb.2003.1447
- Bolotov, I.N., Konopleva, E.S., Vikhrev, I.V. & Kondakov, A.V. (2024). An alarming tendency towards freshwater mussel misidentification in scientific works may bias endangered and invasive species management. Aquatic Conservation: Marine and Freshwater Ecosystems, 34(1), e4061. https://doi.org/10.1002/aqc.4061
- Bortolus, A. (2008). Error cascades in the biological sciences: the unwanted consequences of using bad taxonomy in ecology. Ambio, 37(2), 114–118. https://doi.org/10.1579/0044-7447(2008)37[114:ECITBS]2.0.CO;2
- Bouchet, P., Bary, S., Héros, V. & Marani, G. (2016). How many species of molluscs are there in the world's oceans, and who is going to describe them? En: Héros, V., Strong, E. & Bouchet, P. (eds.), Tropical Deep-Sea Benthos 29. Mémoires du Muséum national d'Histoire naturelle, 208, 9–24. Muséum national d'Histoire naturelle, París.
- Brauer, C.L., Donovan, T.M., Mickey, R.M., Katz, J. & Mitchell, B.R. (2016). A comparison of acoustic monitoring methods for common anurans of the northeastern United States. Wildlife Society Bulletin, 40(1), 140–149. https://doi.org/10.1002/wsb.619
- Britz, R., Hundsdörfer, A. & Fritz, U. (2020). Funding, training, permits: the three big challenges of taxonomy. Megataxa, 1(1), 49–52. https://doi.org/10.11646/megataxa.1.1.10
- Butcher, B.A., Smith, M.A., Sharkey, M.J. & Quicke, D.L.J. (2012). A turbo-taxonomic study of Thai Aleiodes (Aleiodes) and Aleiodes (Arcaleiodes) (Hymenoptera: Braconidae: Rogadinae) based largely on COI barcoded specimens, with rapid descriptions of 179 new species. Zootaxa, 3457, 1–232.
- Byrne, A.Q. (2023). Reimagining the future of natural history museums with compassionate collection. PLOS Biology, 21(5), e3002101. https://doi.org/10.1371/journal.pbio.3002101
- Catalogue of Life (2025). Catalogue of Life 2025 Annual Checklist. https://doi.org/10.48580/dgr6n
- Ceríaco, L.M.P., Gutiérrez, E.E., Dubois, A., et al. (2016). Photography-based taxonomy is inadequate, unnecessary, and potentially harmful for biological sciences. Zootaxa, 4196(3), 435–445. https://doi.org/10.11646/zootaxa.4196.3.9
- Cerretti, P., Nania, D., Di Marco, M., Meier, R., Ascenzi, A., Evenhuis, N. & Pape, T. (2025). Declining rates of species description call for improved taxonomic strategies: insights from a megadiverse insect order. Systematic Entomology, 51(1), e70019. https://doi.org/10.1111/syen.70019
- Clemann, N., Rowe, K.M.C., Rowe, K.C., Raadik, T., Gomon, M., Menkhorst, P., Sumner, J., Bray, D., Norman, M. & Melville, J. (2014). Value and impacts of collecting vertebrate voucher specimens, with guidelines for ethical collection. Memoirs of Museum Victoria, 72, 141–151. https://doi.org/10.24199/j.mmv.2014.72.09
- Coca-de-la-Iglesia, M., Gallego-Narbón, A., Alonso, A., et al. (2024). High rate of species misidentification reduces the taxonomic certainty of European biodiversity databases of ivies (Hedera L.). Scientific Reports, 14, 4876. https://doi.org/10.1038/s41598-024-54735-0
- Collar, N.J. (2000). Opinion. Collecting and conservation: cause and effect. Bird Conservation International, 10(1), 1–15. https://doi.org/10.1017/S0959270900000010
- Collins, R.A. & Cruickshank, R.H. (2013). The seven deadly sins of DNA barcoding. Molecular Ecology Resources, 13(6), 969–975. https://doi.org/10.1111/1755-0998.12046
- Conle, O.V., Hennemann, F.H., Bellanger, Y., Lelong, P., Jourdan, T. & Valero, P. (2020). Studies on neotropical Phasmatodea XX: A new genus and 16 new species from French Guiana. Zootaxa, 4814(1), 1–136. https://doi.org/10.11646/zootaxa.4814.1.1
- Costello, M.J., May, R.M. & Stork, N.E. (2013a). Can we name Earth's species before they go extinct? Science, 339(6118), 413–416. https://doi.org/10.1126/science.1230318
- Czepak, C., Cordeiro Albernaz, K., Vivan, L.M., Oliveira Guimarães, H. & Carvalhais, T. (2013). First reported occurrence of Helicoverpa armigera (Hübner) (Lepidoptera: Noctuidae) in Brazil. Pesquisa Agropecuária Tropical, 43(1), 110–113. https://doi.org/10.1590/S1983-40632013000100015
- Dayrat, B. (2005). Towards integrative taxonomy. Biological Journal of the Linnean Society, 85(3), 407–415. https://doi.org/10.1111/j.1095-8312.2005.00503.x
- Dexter, K.G., Pennington, T.D. & Cunningham, C.W. (2010). Using DNA to assess errors in tropical tree identifications: how often are ecologists wrong and when does it matter? Ecological Monographs, 80(2), 267–286. https://doi.org/10.1890/09-0267.1
- Domínguez, E. & Dos Santos, D.A. (2014). Co-authorship networks (and other contextual factors) behind the growth of taxonomy of South American Ephemeroptera: a scientometric approach. Zootaxa, 3754(1), 59–85. https://doi.org/10.11646/zootaxa.3754.1.3
- Dowsett-Lemaire, F., Wilson, J.G.M., Medland, R.D. & Roxburgh, L. (2015). Excessive bird collecting in Malawi: a new threat. Bird Conservation International, 25, 259–269. https://doi.org/10.1017/S0959270914000446
- Egli, L., LeVan, K.E. & Work, T.T. (2020). Taxonomic error rates affect interpretations of a national-scale ground beetle monitoring program at National Ecological Observatory Network. Ecosphere, 11(4), e03035. https://doi.org/10.1002/ecs2.3035
- Engel, M.S., et al. (2021). The taxonomic impediment: a shortage of taxonomists, not the lack of technical approaches. Zoological Journal of the Linnean Society, 193(2), 381–387. https://doi.org/10.1093/zoolinnean/zlab072
- Fernandez-Triana, J.L. (2022). Turbo taxonomy approaches: lessons from the past and recommendations for the future based on the experience with Braconidae (Hymenoptera) parasitoid wasps. ZooKeys, 1087, 199–220. https://doi.org/10.3897/zookeys.1087.76720
- Flores-Rivera, X.L., Paula-Moraes, S.V., Johnson, J.W., Jack, C.J. & Perera, O.P. (2022). Helicoverpa genus on the edge of the continental U.S.: flight phenology, analysis of hybrid presence, and insecticide performance in high-input field crops in Puerto Rico. Frontiers in Insect Science, 2, 1010310. https://doi.org/10.3389/finsc.2022.1010310
- Fontaine, B., Perrard, A. & Bouchet, P. (2012a). 21 years of shelf life between discovery and description of new species. Current Biology, 22(22), R943–R944. https://doi.org/10.1016/j.cub.2012.10.029
- Fontaine, B., van Achterberg, K., Alonso-Zarazaga, M.A., Araujo, R., et al. (2012b). New species in the Old World: Europe as a frontier in biodiversity exploration, a test bed for 21st century taxonomy. PLoS ONE, 7(5), e36881. https://doi.org/10.1371/journal.pone.0036881
- Gezon, Z.J., Wyman, E.S., Ascher, J.S., Inouye, D.W. & Irwin, R.E. (2015). The effect of repeated, lethal sampling on wild bee abundance and diversity. Methods in Ecology and Evolution, 6(9), 1044–1054. https://doi.org/10.1111/2041-210X.12375
- Goodwin, Z.A., Harris, D.J., Filer, D., Wood, J.R.I. & Scotland, R.W. (2015). Widespread mistaken identity in tropical plant collections. Current Biology, 25(22), R1066–R1067. https://doi.org/10.1016/j.cub.2015.10.002
- Grieneisen, M.L., Zhan, Y., Potter, D. & Zhang, M. (2014). Biodiversity, taxonomic infrastructure, international collaboration, and new species discovery. BioScience, 64(4), 322–332. https://doi.org/10.1093/biosci/biu035
- Hebert, P.D.N., Cywinska, A., Ball, S.L. & deWaard, J.R. (2003). Biological identifications through DNA barcodes. Proceedings of the Royal Society B: Biological Sciences, 270(1512), 313–321. https://doi.org/10.1098/rspb.2002.2218
- Hickerson, M.J., Meyer, C.P. & Moritz, C. (2006). DNA barcoding will often fail to discover new animal species over broad parameter space. Systematic Biology, 55(5), 729–739. https://doi.org/10.1080/10635150600969898
- Hope, A.G., Sandercock, B.K. & Malaney, J.L. (2018). Collection of scientific specimens: benefits for biodiversity sciences and limited impacts on communities of small mammals. BioScience, 68(1), 35–42. https://doi.org/10.1093/biosci/bix141
- Hopkins, G.W. & Freckleton, R.P. (2002). Declines in the numbers of amateur and professional taxonomists: implications for conservation. Animal Conservation, 5(3), 245–249. https://doi.org/10.1017/S1367943002002299
- Høye, T.T., et al. (2021). Deep learning and computer vision will transform entomology. Proceedings of the National Academy of Sciences, 118(2), e2002545117. https://doi.org/10.1073/pnas.2002545117
- ICZN, International Commission on Zoological Nomenclature (1999). International Code of Zoological Nomenclature (4th ed.). London: International Trust for Zoological Nomenclature.
- Janzen, D.H. & Hallwachs, W. (2011). Joining inventory by parataxonomists with DNA barcoding of a large complex tropical conserved wildland in northwestern Costa Rica. PLoS ONE, 6(8), e18123. https://doi.org/10.1371/journal.pone.0018123
- Kollár, J. (2026). Integration, not replacement: molecular methods and a new equilibrium in taxonomy. BioScience, 76(9), 773–775. https://doi.org/10.1093/biosci/biag065
- Kollár, J., Kopalová, K. & Kohler, T.J. (2025). Diatom studies three decades into the molecular age: a bibliometric analysis reveals genetic underexploration of diatoms compared to other taxa. Fottea, 25(1), 1–11. https://doi.org/10.5507/fot.2024.009
- Korshunova, T., Picton, B., Furfaro, G., Mariottini, P., Pontes, M., Prkić, J., Fletcher, K., Malmberg, K., Lundin, K. & Martynov, A. (2019). Multilevel fine-scale diversity challenges the ‘cryptic species’ concept. Scientific Reports, 9, 6732. https://doi.org/10.1038/s41598-019-42297-5
- Kozel, P., Pipan, T., Šajna, N., Polak, S. & Novak, T. (2017). Mitigating the conflict between pitfall-trap sampling and conservation of terrestrial subterranean communities in caves. International Journal of Speleology, 46(3), 359–368. https://doi.org/10.5038/1827-806X.46.3.2123
- Li, X., Yang, D., Wang, L. & Wiens, J.J. (2025). The past and future of known biodiversity: Rates, patterns, and projections of new species over time. Science Advances, 11(49), eadz3071. https://doi.org/10.1126/sciadv.adz3071
- Löbl, I., Klausnitzer, B., Hartmann, M. & Krell, F.-T. (2023). The silent extinction of species and taxonomists: an appeal to science policymakers and legislators. Diversity, 15(10), 1053. https://doi.org/10.3390/d15101053
- Marques, V., Milhau, T., Albouy, C., Dejean, T., Manel, S., Mouillot, D. & Juhel, J.-B. (2021). GAPeDNA: assessing and mapping global species gaps in genetic databases for eDNA metabarcoding. Diversity and Distributions, 27(10), 1880–1892. https://doi.org/10.1111/ddi.13142
- Marshall, S.A. & Evenhuis, N.L. (2015). New species without dead bodies: a case for photo-based descriptions, illustrated by a striking new species of Marleyimyia Hesse (Diptera, Bombyliidae) from South Africa. ZooKeys, 525, 117–127. https://doi.org/10.3897/zookeys.525.6143
- Meier, R., Blaimer, B.B., Buenaventura, E., Hartop, E., von Rintelen, T., Srivathsan, A. & Yeo, D. (2021). A re-analysis of the data in Sharkey et al.'s (2021) minimalist revision reveals that BINs do not deserve names, but BOLD Systems needs a stronger commitment to open science. Cladistics, 38(2), 264–275. https://doi.org/10.1111/cla.12489
- Meier, R., Shiyang, K., Vaidya, G. & Ng, P.K.L. (2006). DNA barcoding and taxonomy in Diptera: a tale of high intraspecific variability and low identification success. Systematic Biology, 55(5), 715–728. https://doi.org/10.1080/10635150600969864
- Metcalf, O.C., de Moura, N.G., Hopping, W.A., et al. (2026). BirdNET and Perch perform poorly for species inventories in Amazonia but can provide a proxy for community turnover. Ecological Informatics, 98, 103966. https://doi.org/10.1016/j.ecoinf.2026.103966
- Meyer, C.P. & Paulay, G. (2005). DNA barcoding: error rates based on comprehensive sampling. PLoS Biology, 3(12), e422. https://doi.org/10.1371/journal.pbio.0030422
- Mikšić, R. (1982). Monographie der Cetoniinae der Paläarktischen und Orientalischen Region (Coleoptera, Lamellicornia). Band 3. Forstinstitut in Sarajevo. 530 pp.
- Minteer, B.A., Collins, J.P., Love, K.E. & Puschendorf, R. (2014). Avoiding (re)extinction. Science, 344(6181), 260–261. https://doi.org/10.1126/science.1250953
- Moratelli, R. (2014). Wildlife biologists are on the right track: a mammalogist's view of specimen collection. Zoologia, 31(5), 413–417. https://doi.org/10.1590/S1984-46702014000500001
- Nachman, M.W., Beckman, E.J., Bowie, R.C.K., et al. (2023). Specimen collection is essential for modern science. PLOS Biology, 21(11), e3002318. https://doi.org/10.1371/journal.pbio.3002318
- Neumann, D., Borisenko, A.V., Coddington, J.A., et al. (2018). Global biodiversity research tied up by juridical interpretations of access and benefit sharing. Organisms Diversity & Evolution, 18, 1–12. https://doi.org/10.1007/s13127-017-0347-1
- Nilsson, R.H., Ryberg, M., Kristiansson, E., Abarenkov, K., Larsson, K.-H. & Kõljalg, U. (2006). Taxonomic reliability of DNA sequences in public sequence databases: a fungal perspective. PLoS ONE, 1(1), e59. https://doi.org/10.1371/journal.pone.0000059
- Noll, F.B., Barbosa, M.F. de C., Santos, E.F., Castilho, R. de C., Lamas, C.J.E., Freitas, A.V.L. & de Moraes, G.J. (2022). The contribution of the BIOTA/FAPESP Program to the advancement of the knowledge on terrestrial invertebrates. Biota Neotropica, 22(spe), e20221398. https://doi.org/10.1590/1676-0611-bn-2022-1398
- Packer, L., Grixti, J.C., Roughley, R.E. & Hanner, R. (2009). The status of taxonomy in Canada and the impact of DNA barcoding. Canadian Journal of Zoology, 87(12), 1097–1110. https://doi.org/10.1139/Z09-100
- Padial, J.M., Miralles, A., De la Riva, I. & Vences, M. (2010). The integrative future of taxonomy. Frontiers in Zoology, 7, 16. https://doi.org/10.1186/1742-9994-7-16
- Pape, T., et al. (2016). Species can be named from photos. Nature, 537, 307. https://doi.org/10.1038/537307b
- Remsen, J.V. (1995). The importance of continued collecting of bird specimens to ornithology and bird conservation. Bird Conservation International, 5(2-3), 146–180. https://doi.org/10.1017/S095927090000099X
- Rodman, J.E. & Cody, J.H. (2003). The taxonomic impediment overcome: NSF's Partnerships for Enhancing Expertise in Taxonomy (PEET) as a model. Systematic Biology, 52(3), 428–435. https://doi.org/10.1080/10635150309326
- Rodman, J.E. (2007). Reflections on PEET, the Partnerships for Enhancing Expertise in Taxonomy. Zootaxa, 1668(1), 41–46. https://doi.org/10.11646/zootaxa.1668.1.5
- Rubinoff, D., Cameron, S. & Will, K. (2006). A genomic perspective on the shortcomings of mitochondrial DNA for “barcoding” identification. Journal of Heredity, 97(6), 581–594. https://doi.org/10.1093/jhered/esl036
- Russo, D. & Voigt, C.C. (2016). The use of automated identification of bat echolocation calls in acoustic monitoring: a cautionary note for a sound analysis. Ecological Indicators, 66, 598–602. https://doi.org/10.1016/j.ecolind.2016.02.036
- Rydell, J., Nyman, S., Eklöf, J., Jones, G. & Russo, D. (2017). Testing the performances of automated identification of bat echolocation calls: a request for prudence. Ecological Indicators, 78, 416–420. https://doi.org/10.1016/j.ecolind.2017.03.023
- Sabatinelli, G. (1981). Le Oxythyrea Muls. del Mediterraneo: studi morfologici sistematici (Coleoptera, Scarabaeoidae). Fragmenta Entomologica, 16, 45–60.
- Sharkey, M.J., Janzen, D.H., Hallwachs, W., et al. (2021). Minimalist revision and description of 403 new species in 11 subfamilies of Costa Rican braconid parasitoid wasps, including host records for 219 species. ZooKeys, 1013, 1–665. https://doi.org/10.3897/zookeys.1013.55600
- Smith, R., Rassmann, K., Davies, H. & King, N. (Eds.) (2011). Why taxonomy matters. Egham: BioNet-International.
- Sosa-Gómez, D.R., Specht, A., Paula-Moraes, S.V., Lopes-Lima, A., Yano, S.A.C., Micheli, A., et al. (2016). Timeline and geographical distribution of Helicoverpa armigera (Hübner) (Lepidoptera, Noctuidae: Heliothinae) in Brazil. Revista Brasileira de Entomologia, 60, 101–104. https://doi.org/10.1016/j.rbe.2015.09.008
- Stork, N.E. (2018). How many species of insects and other terrestrial arthropods are there on Earth? Annual Review of Entomology, 63, 31–45. https://doi.org/10.1146/annurev-ento-020117-043348
- Stowell, D. (2022). Computational bioacoustics with deep learning: a review and roadmap. PeerJ, 10, e13152. https://doi.org/10.7717/peerj.13152
- Tautz, D., Arctander, P., Minelli, A., Thomas, R.H. & Vogler, A.P. (2003). A plea for DNA taxonomy. Trends in Ecology & Evolution, 18(2), 70–74. https://doi.org/10.1016/S0169-5347(02)00041-1
- Valan, M., Makonyi, K., Maki, A., Vondráček, D. & Ronquist, F. (2019). Automated taxonomic identification of insects with expert-level accuracy using effective feature transfer from convolutional networks. Systematic Biology, 68(6), 876–895. https://doi.org/10.1093/sysbio/syz014
- Waeber, P.O., Gardner, C.J., Lourenço, W.R. & Wilmé, L. (2017). On specimen killing in the era of conservation crisis: a quantitative case for modernizing taxonomy and biodiversity inventories. PLoS ONE, 12(9), e0183903. https://doi.org/10.1371/journal.pone.0183903
- Wiemers, M. & Fiedler, K. (2007). Does the DNA barcoding gap exist? A case study in blue butterflies (Lepidoptera: Lycaenidae). Frontiers in Zoology, 4, 8. https://doi.org/10.1186/1742-9994-4-8
- Will, K.W. & Rubinoff, D. (2004). Myth of the molecule: DNA barcodes for species cannot replace morphology for identification and classification. Cladistics, 20(1), 47–55. https://doi.org/10.1111/j.1096-0031.2003.00008.x
- Yssouf, A., Socolovschi, C., Flaudrops, C., et al. (2013). Matrix-assisted laser desorption ionization–time of flight mass spectrometry: an emerging tool for the rapid identification of mosquito vectors. PLoS ONE, 8(8), e72380. https://doi.org/10.1371/journal.pone.0072380
- Ziegler, A.J., Li, X. & Wiens, J.J. (2025). The evidence for new species across the Tree of Life: morphology still rules the largest kingdoms. Bulletin of the Society of Systematic Biologists, 4(1), 10466. https://doi.org/10.18061/bssb.v4i1.10466